조명나방(Ostrinia furnacalis) 유충에 대한 신경계 교란 살충제 3종의 섭식 및 접촉독성 효과

초록
조명나방(Ostrinia furnacalis)은 옥수수의 주요 해충으로 유충의 발육단계와 약제 노출경로에 따라 살충제 감수성이 달라질 수 있다. 본 연구에서는 서로 다른 작용기작을 갖는 스피네토람 WG, 비펜트린 EC 및 플룩사메타마이드 EW 3종에 대한 조명나방 3령과 5령 유충의 섭식독성과 직접접촉독성을 평가하였다. 각 독성평가에서 살충률은 약제 농도가 증가하고 처리 후 시간이 경과함에 따라 증가하였으며, 유충의 발육이 진행될수록 약제 감수성은 감소하였다. 섭식독성에서 스피네토람, 비펜트린 및 플룩사메타마이드의 반수치사농도 값은 3령 유충에서 각각 9.00, 20.00 및 52.60 ppm이었으며, 5령 유충에서는 각각 18.81, 33.42 및 200.14 ppm이었다. 접촉독성에서의 반수치사농도 값은 3령 유충에서 각각 13.57, 7.22 및 35.27 ppm이었으며, 5령 유충에서는 각각 30.79, 12.41 및 95.32 ppm이었다. 5령과 3령 유충 간 반수치사농도 비는 섭식독성에서 1.67~3.81배, 접촉독성에서 1.72~2.70배의 범위로 나타났다. 섭식 노출에서는 스피네토람이 다른 약제에 비해 높은 살충활성을 나타내었으며, 접촉 노출에서는 비펜트린이 높은 활성을 보였다. 이상의 결과는 조명나방의 방제효율 향상과 살충제 저항성 관리를 위해 어린 유충기를 대상으로 약제를 처리하고 서로 다른 작용기작의 살충제를 교호 사용하는 것이 중요함을 시사한다.
Abstract
The Asian corn borer, Ostrinia furnacalis, is a major pest affecting maize. Its susceptibility to insecticides is determined by larval development and route of exposure. We evaluated the oral and contact toxicity of three insecticides with different modes of action, Spinetoram WG, Bifenthrin EC, and Fluxametamide EW, with different modes of action against 3rd and 5th instar larvae of O. furnacalis. A feeding bioassay was used to assess oral toxicity and larvae directly sprayed with insecticide solution were evaluated for contact toxicity. Mortality increased with increase in insecticide concentration and time following treatment, whereas susceptibility decreased with larval development. In oral toxicity, the LC50 values of Spinetoram, Bifenthrin, and Fluxametamide were 9.00, 20.00, and 52.60 ppm, respectively, for 3rd instar larvae and 18.81, 33.42, and 200.14 ppm, respectively, for 5th instar larvae. In comparison, the corresponding LC50 values in the contact toxicity assay were 13.57, 7.22, and 35.27 ppm, respectively, for 3rd instar larvae and 30.79, 12.41, and 95.32 ppm, respectively, for 5th instar larvae. The ratios of LC50 values between 5th and 3rd instar larvae ranged from 1.67 to 3.81 for oral toxicity and from 1.72 to 2.70 for contact toxicity. Spinetoram showed relatively higher activity through oral exposure, whereas Bifenthrin showed higher activity through contact exposure. From our findings, we demonstrate that it is pivotal to target early stages of O. furnacalis larvae and rotate insecticides with different modes of action to improve control efficacy and managing insecticide resistance.
Keywords:
Contact toxicity, Insecticide susceptibility, Insecticide resistance management, Ostrinia furnacalis, Oral toxicity키워드:
조명나방, 섭식독성, 접촉독성, 살충제 감수성, 살충제 저항성 관리서 론
나비목의 조명나방 (Ostrinia furnacalis)은 아시아의 열대 및 온대 지역과 오세아니아 일부 지역에 널리 분포하는 주요 농업해충이다(Mutuura and Munroe, 1970; Bae, 2001, Grahame, 2022). 옥수수가 주요 기주이지만 수수, 조, 율무 등의 벼과 작물뿐만 아니라 목화, 토마토, 고추, 생강 및 인삼에서도 발생하는 것으로 알려져 있어 비교적 넓은 기주범위를 갖는다(Lee et al., 2022).
조명나방의 발생과 휴면 특성은 서식 지역의 위도와 기후 조건에 따라 크게 달라진다. 열대지역에서는 뚜렷한 휴면 없이 연간 9~12세대가 중첩되어 발생하는 반면, 겨울철 월동기간이 존재하는 고위도 지역에서는 연간 1~6세대가 발생한다(Nafus and Schreiner, 1991). 국내에서는 중부지역의 경우 연간 2세대와 3세대를 경과하는 개체들이 함께 존재하는 복합적인 생활사가 관찰되며, 성충은 대체로 5월부터 10월까지 세 차례 발생한다(Kim et al., 2020). 알은 주로 기주식물의 잎 뒷면에 난괴로 산란하며(Quan et al., 2023), 부화한 유충은 일반적으로 5~7령을 거쳐 번데기가 된다(Lee et al., 1980). 이 가운데 1세대와 2세대 유충이 주로 6~8월에 옥수수를 가해한다. 조명나방은 수확 후 남아 있는 옥수수 줄기와 잔재물 내부에서 최종령 유충으로 월동하고, 이듬해 늦봄부터 초여름 사이에 용화와 우화를 시작한다(Lee et al., 1980).
일반적으로 조명나방 유충은 3령 전후부터 줄기나 이삭 내부로 침입하기 때문에 식물체 내부로 이동한 이후에는 약제가 유충에 충분히 도달하기 어렵다(Nafus and Schreiner, 1987; Guo et al., 2022). 또한 유충의 령기가 높아질수록 살충제에 대한 감수성이 감소하므로, 부화 직후부터 식물체 내부로 침입하기 전까지의 어린 유충기에 방제하는 것이 중요하다(Jung et al., 2021; Jeong et al., 2023). 따라서 조명나방의 효과적인 화학적 방제를 위해서는 유충 발생 시기와 작물의 생육단계를 고려하여 적절한 약제를 선정하고, 약제의 작용 특성에 적합한 시기에 처리해야 한다.
최근 연구에서 중국 허난성에서 채집한 조명나방 지역 개체에 대해 emamectin 등 일부 약제가 저항성 발달의 초기 단계를 보이는 보고가 있었다(Ye et al., 2026). 동일하거나 유사한 작용기작을 갖는 살충제의 연속적인 사용은 해충 집단에 대한 강한 선택압으로 작용하여 약제 저항성의 발달을 일으킨다. 이러한 문제를 완화하기 위해서는 서로 다른 작용기작을 갖는 약제를 교호 처리하고, 해충의 세대와 작물의 생육단계를 고려한 살충제 저항성 관리 전략을 수립해야 한다(Sparks et al., 2020; IRAC, 2026). Insecticide Resistance Action Committee (IRAC)의 분류에 따르면 스피네토람(spinetoram), 비펜트린(bifenthrin) 및 플룩사메타마이드(fluxametamide) 살충제는 각각 IRAC 5, 3A 및 30번 그룹에 속한다. 이 살충제들은 곤충의 신경계 교란에 관여하지만, 작용점이 달라서 각 약제의 작용기작은 서로 구별된다.
스피네토람은 토양 방선균인 Saccharopolyspora spinosa의 발효산물에서 유래한 스피노신을 구조적으로 변형하여 개발한 살충제로, Spinetoram-J와 Spinetoram-L의 혼합물로 구성된다(Kirst, 2010). 스피네토람은 니코틴성 아세틸콜린 수용체 알로스테릭 조절제(allosteric modulator)로 분류되며, 곤충의 신경전달을 비정상적으로 활성화하여 운동 이상, 섭식 정지, 마비 및 치사를 유발한다. 그러나 스피노신계 살충제는 기존의 네오니코티노이드계 살충제와는 다른 수용체 결합 부위에 작용하며, 특히 나비목과 총채벌레목 해충에 높은 활성을 나타낸다(Salgado, 1998; Lu et al., 2022).
비펜트린은 합성 피레스로이드계 살충제로서 곤충 신경세포막의 전압개폐성 나트륨 통로에 결합하여 통로의 정상적인 개폐를 지연시키고, 반복적인 신경 흥분과 운동 이상, 마비 및 치사를 유발한다(Soderlund, 2012). 비펜트린은 해충이 약제와 직접 접촉하거나 약제가 처리된 식물체를 섭식할 때 살충활성을 나타내며, 비교적 빠른 살충효과를 나타내는 광범위 살충제로 이용되고 있다. 그러나 피레스로이드계 살충제는 장기간 또는 반복적으로 사용될 경우 나트륨 통로의 표적 부위 변이와 해독효소 활성 증가 등에 의해 저항성이 발달할 가능성이 있으므로, 다른 작용기작 약제와의 교호사용이 요구된다(Soderlund and Knipple, 2003; Soderlund, 2012).
플룩사메타마이드는 아이속사졸린계의 살충제로서 비교적 새로운 살충성분이다. 곤충의 중추신경계에서 억제성 신경전달물질로 작용하는 gamma-aminobutyric acid (GABA) 개폐성 염소 통로에 대한 알로스테릭 조절제로 분류되며 GABA의 기능을 억제하여 정상적인 신경전달을 방해하고 신경계의 과흥분, 경련, 마비 및 치사를 유발한다. 나비목의 배추좀나방 및 파밤나방에 높은 살충활성이 보고되었다(Yin et al., 2025). 따라서 조명나방 방제를 위한 신규 후보 약제로 평가할 필요가 있다.
본 연구에서는 옥수수 밭에서 채집한 조명나방 개체를 대상으로 작용기작이 서로 다른 스피네토람, 비펜트린 및 플룩사메타마이드의 처리방법별 살충효과를 비교하였다. 현재 세 가지 농약은 나비목 해충에 대해 활성을 보이지만, 스피네토람을 제외한 2개 약제는 옥수수를 가해하는 조명나방의 방제약제로 등록되어 있지 않아 연구가 필요하다. 이에 조명나방 방제에 효과적인 약제를 선발하고, 작용기작에 기반한 효율적인 약제 교호사용 체계를 마련하기 위한 기초 자료를 제공하고자 하였다.
재료 및 방법
조명나방의 채집 및 사육
이 연구에 사용한 조명나방은 충남 서천의 사료용 옥수수 재배지에서 채집하여 실험실에서 4세대 동안 사육한 개체를 이용하였다. 생물검정에 사용한 개체는 모두 3령과 5령의 유충을 사용하였다. 성충은 10% 설탕물을 제공하였으며, 유충은 Jung et al.(2005)의 방법에 따라 제조한 인공사료를 공급하였다. 성충은 40 × 20 × 15 cm 크기의 플라스틱 용기(Ilshin Platech, Daegu, Korea) 안에서 통기성이 있는 뚜껑에 유산지를 붙여 산란을 유도하였으며, 유충은 직경 직경 10 cm의 페트리디쉬(SPL Life Sciences, Pocheon, Korea)에서 개체별로 사유하였다. 성충과 유충 모두 온도 25±2oC, 상대습도 60±8%, 광조건 16:8(L:D)의 환경조건에서 누대 사육하였다.
시험 약제
조명나방 방제에 사용한 약제는 방제약제로 등록되어 있는 스피노신계 스피네토람 입상수화제(FarmHannong Co., Ltd., Gumi, Korea), 미등록 약제인 피레스로이드계 비펜트린 유제(NongHyup Chemical Co., Ltd., Sungnam, Korea)와 아이속사졸린계 플룩사메타마이드 유탁제(NongHyup Chemical Co., Ltd., Sungnam, Korea) 3종의 단제를 구매하여 사용하였다(Table 1). 비펜트린의 유효기간은 2026년 10월 31일까지였으며, 나머지 두 약제는 모두 2027년 10월 31일까지로 시험기간 동안 유효성분의 함량과 품질이 보장된 약제를 사용하였다. 각 약제는 멸균 증류수를 이용하여 추천농도를 기준으로 1/2 농도씩 약제를 희석하여 시험에 사용하였다.

Information of test pesticides, which are used in this study
약제 감수성 평가
시험 약제에 대한 생물검정은 Park et al.(2025)의 실험법과 동일하게 섭식독성 분석을 위한 사료 침지법과 직접 접촉독성 분석을 위한 충체분무법으로 진행하였다. 사료 침지법의 경우 일정 크기의 인공사료를 각 농도별로 희석된 약제에 침지 후 음건하여 대상 곤충에 제공하였다. 충체 분무법의 경우 각 농도별로 희석된 약제 1 mL를 소형분무기(Dongbang Plastic, Seoul, Korea)를 사용하여 유충의 몸에 직접 분무하였다. 모든 생물검정은 3령과 5령을 대상으로 수행하였으며, 직경 10 cm의 페트리접시(SPL Life Sciences, Pocheon, Korea)에 5마리의 유충을 처리하였다. 사료 침지법의 경우 6시간 절식을 시킨 유충을 시험에 사용하였다. 각 약제별 처리당 15마리씩 구성이 되었으며, 각 처리당 3반복으로 진행하였다. 약제 처리 후 5일간 24시간 간격으로 유충의 치사여부를 조사하였다. 이때 치사 유충은 유충핀셋을 이용해 움직임을 조사한 후 능동적 반응 움직임이 없는 개체로 규정하였다. 무처리는 약제 희석에 사용한 멸균증류수를 이용하여 생물검정을 수행하였다.
통계 분석
살충률은 SAS/STAT 통계프로그램(SAS Institute Inc., 1989)의 PROC GLM을 이용하여 ANOVA 분석 후 평균간 비교를 실시하였다. 무처리구의 평균 치사율은 4.44%로 낮게 나타났으므로, 무처리구의 자연치사에 대한 별도의 Abbott 보정 없이 관찰된 치사율을 이용하여 Probit 분석을 수행하였다. 각 시험 약제의 섭식독성과 접촉독성의 반수치사농도(Median lethal concentration, LC50) 값은 약제 처리 후 24시간 조사 결과를 사용하고, SAS/STAT의 probit 분석을 이용하여 계산하였다.
결 과
조명나방 유충에 대한 3종 살충제의 섭식독성
시험에 사용한 3종 살충제의 섭식독성을 조명나방 3령과 5령 유충을 대상으로 조사한 결과, 살충효과는 약제의 종류, 희석배수 및 처리 후 경과시간에 따라 차이를 나타냈다(Fig. 1). 전반적으로 희석배수가 증가할수록 초기 살충률이 낮아지고 살충효과의 발현이 지연되는 경향을 보였다. 한편, 무처리구의 치사율은 전체 시험기간 동안 최대 4.44%로 낮게 나타났다(data not shown).
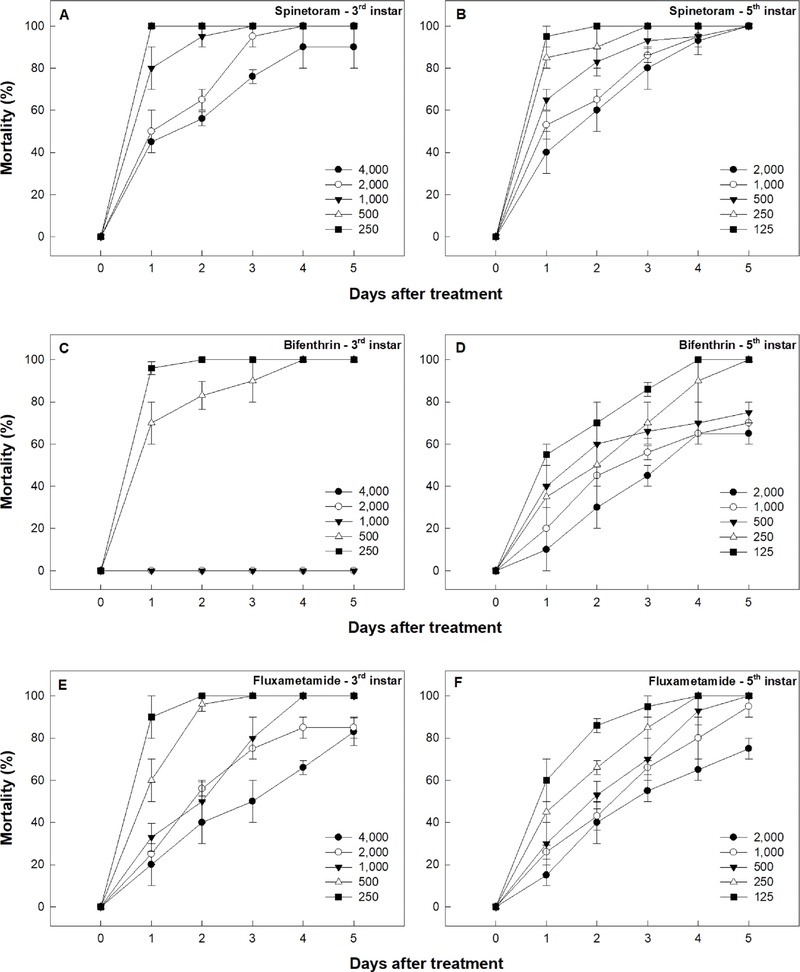
Oral toxicity of Spinetoram (Water Dispersible Granule, WG), Bifenthrin (Emulsifiable Concentrate, EC), and Fluxametamide (Emulsion in water, EW) to 3rd and 5th instar larvae of Ostrinia furnacalis over days after treatment (DAT). (A) Spinetoram WG, 3rd instar larvae; (B) Spinetoram WG, 5th instar larvae; (C) Bifenthrin EC, 3rd instar larvae; (D) Bifenthrin EC, 5th instar larvae; (E) Fluxametamide EW, 3rd instar larvae; and (F) Fluxametamide EW, 5th instar larvae. Numbers next to the symbols indicate the dilution factors of recommended concentration for each insecticide. Fifteen larvae were tested per replicate with three independent replicates per treatment. Values are presented as means ± SE. Control mortality did not exceed 4.44% and is not shown.
스피네토람에 대한 3령 유충의 감수성은 높게 나타났다(Fig. 1A). 4,000배 희석액의 경우 처리 후 1일차에 40%의 살충효과를 나타내었으며, 일반적인 추천농도인 1,000배 희석액에서는 처리 후 1일에 80.0%에서 처리 후 3일에 100%로 증가하였다(F = 209.80; df = 5, 10; P < 0.0001). 500배와 250배의 희석액에서는 처리 후 1일차에 100%로 살충률을 보여주었다. 5령 유충에서는 동일한 수준의 살충효과에 도달하는 데 시간이 더 소요되었다(Fig. 1B). 가장 낮은 농도인 2,000배 희석액은 처리 후 1일에 38%, 5일에 100%의 살충율을 나타내었다.
비펜트린은 3령 유충에서 1,000배 이상의 희석액에서는 약량이 낮아 처리 후 5일까지 100%의 살충효과가 나타나지 않았다(Fig. 1C). 500배 희석액 처리에서는 처리 후 1일에 70%의 살충률을 보이며 4일에 100%에 도달하였다(F = 119.18; df = 5, 10; P < 0.0001). 5령 유충에서는 250배 희석액에서 처리 후 5일에 최종 살충률이 100%에 도달하였다(Fig. 1D). 그러나 약제 농도가 낮은 500배 희석액 이상의 처리에서는 처리 후 5일에 최대 76.7% 미만의 살충률을 나타냈다(F = 77.12; df = 5, 10; P < 0.0001).
플룩사메타마이드는 3령 유충에서 250배 희석액은 처리 후 2일에 100% 살충률에 도달하였다(Fig. 1E). 1,000배 희석액의 경우 처리 후 1일에 30.0%의 살충율을 보이며, 처리 후 4일에 100%에 도달하였다(F = 95.14; df = 5, 10; P < 0.0001). 5령 유충에서는 125배 희석액 처리 후 1일에 60%의 살충율을 보였으나, 처리 후 4일에 100%에 도달하였다(F = 152.62; df = 5, 10; P < 0.0001). 이 외 다른 희석액의 경우 처리 후 5일에 최대 90.0%의 살충효과를 나타내었다(Fig. 1F).
3종의 살충제를 섭식 처리 1일 차 농도별 사망률을 이용하여 산출한 반수치사농도는 3령 유충에서 스피네토람, 비펜트린 및 플룩사메타마이드가 각각 9.00, 20.00 및 52.60 ppm이었으며, 5령 유충에서는 각각 18.81, 33.42 및 200.14 ppm이었다(Table 2). 또한 3령 대비 5령의 반수치사농도 비는 스피네토람 2.09배, 비펜트린 1.67배 및 플룩사메타마이드 3.81배로, 모든 약제에서 3령 유충의 반수치사농도가 5령 유충보다 낮았다. 특히 플룩사메타마이드에서 발육단계에 따른 반수치사농도의 차이가 가장 크게 나타났다.
Oral toxicity of 3 pesticides against 3rd and 5th instar larvae of Asian corn borer, Ostrinia furnacalis
조명나방 유충에 대한 3종 살충제의 직접접촉독성
섭식독성과 유사하게 3종 살충제에 대한 접촉독성 효과는 약제의 종류, 희석배수 및 처리 후 경과시간에 따라 차이를 나타냈다(Fig. 2). 약제의 희석배수가 증가할수록 초기 살충률이 낮아지고 살충효과의 발현이 지연되었으며, 무처리구의 치사율은 전체 시험기간 동안 섭식독성시험과 동일하게 4.44% 이하로 유지되었다(data not shown).
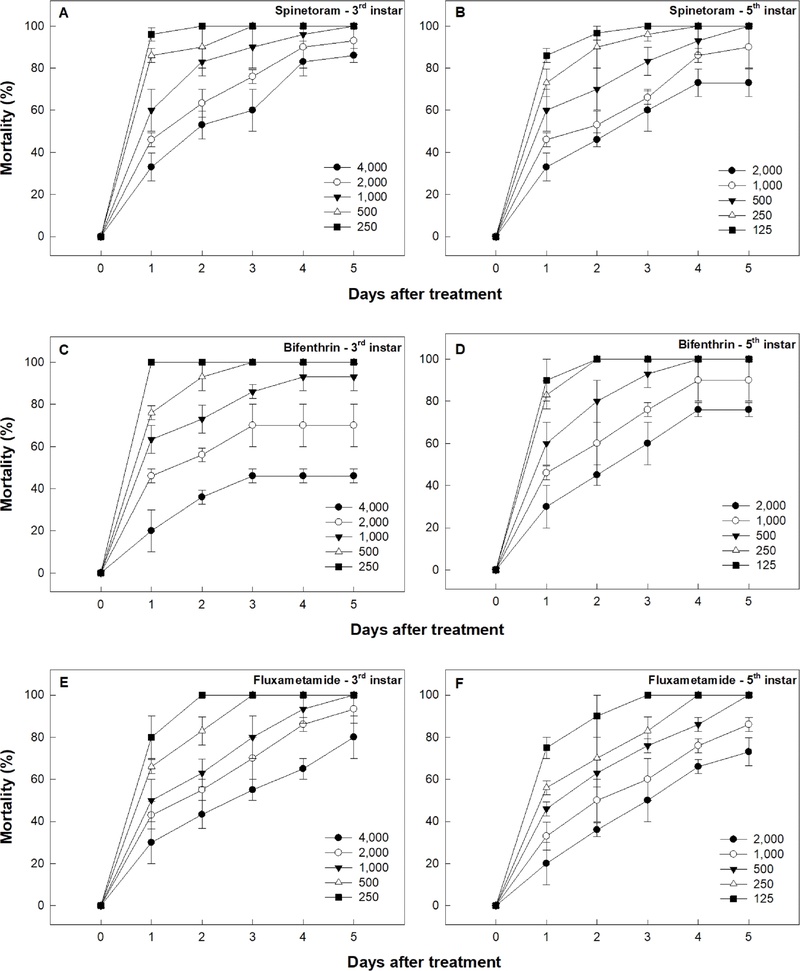
Contact toxicity of Spinetoram (Water Dispersible Granule, WG), Bifenthrin (Emulsifiable Concentrate, EC), and Fluxametamide (Emulsion in water, EW) to 3rd and 5th instar larvae of Ostrinia furnacalis over days after treatment (DAT). (A) Spinetoram WG, 3rd instar larvae; (B) Spinetoram WG, 5th instar larvae; (C) Bifenthrin EC, 3rd instar larvae; (D) Bifenthrin EC, 5th instar larvae; (E) Fluxametamide EW, 3rd instar larvae; and (F) Fluxametamide EW, 5th instar larvae. Numbers next to the symbols indicate the dilution factors of recommended concentration for each insecticide. Fifteen larvae were tested per replicate with three independent replicates per treatment. Values are presented as means ± SE. Control mortality did not exceed 4.44% and is not shown.
스피네토람은 3령 유충에서 250배 희석액은 처리 후 1일에 93.3%에서 2일 후 100%에 도달하여 가장 높은 살충효과를 나타내었다(Fig. 2A). 추천농도인 1,000배 희석액에서는 처리 후 1일에 70.0%에서 처리 후 5일에 100%로 살충률이 증가하였다(F = 109.51; df = 5, 10; P < 0.0001). 5령 유충에서도 농도 및 시간 의존적인 살충효과가 확인되었다(Fig. 2B). 125배 희석액의 경우 처리 1일에 86.7%의 살충률을 보였으며, 처리 3일에 100%에 도달하였다(F = 513.63; df = 5, 10; P < 0.0001).
비펜트린은 3령 유충에서 250배 희석액은 처리 후 1일에 100%의 살충률을 나타냈으며, 500배 희석액은 처리 후 1일에 76.7%에서 처리 후 3일에 100%의 살충률을 보였다(Fig. 2C). 1,000배 희석액은 처리 후 5일에 90.0%의 살충률을 보였으며(F = 49.78; df = 5, 10; P < 0.0001), 2,000배와 4,000배 희석액은 각각 73.3%와 46.7%를 나타내었다. 5령 유충에서는 125배와 250배 희석액에서 처리 후 2일에 100%, 500배 희석액은 처리 후 4일에 100%의 살충률을 나타내었다(Fig. 2D). 그러나 1,000배 희석액에서는 처리 후 5일에 각각 90.0%의 살충률을 나타내었다(F = 137.43; df = 5, 10; P < 0.0001).
플룩사메타마이드 3령 유충에서 250배 희석액은 처리 후 2일에, 500배 희석액은 처리 후 3일에 100%의 살충률에 도달하였다(Fig. 2E). 1,000배 희석액은 처리 후 5일에 100%를 나타냈다(F = 78.11; df = 5, 10; P < 0.0001). 5령 유충에서는 125배와 250배의 희석액 처리에서 각각 3일과 4일 후 100% 살충률을 보였다(Fig. 2F). 그러나 추천농도인 1,000배 희석액에서는 처리 후 5일에 86.7%의 살충률이 확인되었다(F = 26.06; df = 5, 10; P < 0.0001).
3종의 살충제를 접촉 처리 1일 차 농도별 사망률을 이용하여 산출한 반수치사농도는 3령 유충에서 스피네토람, 비펜트린 및 플룩사메타마이드가 각각 13.57, 7.22 및 35.27 ppm이었으며, 5령 유충에서는 각각 30.79, 12.41 및 95.32 ppm이었다(Table 3). 3령 대비 5령의 반수치사농도 비는 각각 2.27배, 1.72배 및 2.70배로 나타났다. 두 발육단계 모두에서 비펜트린의 반수치사농도가 가장 낮았으며, 스피네토람과 플룩사메타마이드가 그 뒤로 나타났다.
Contact toxicity of 3 pesticides against 3rd and 5th instar larvae of Asian corn borer, Ostrinia furnacalis
고 찰
본 연구에서는 서로 다른 작용기작을 갖는 스피네토람, 비펜트린 및 플룩사메타마이드에 대한 조명나방 유충의 감수성을 섭식독성과 접촉독성으로 구분하여 비교하였다. 세 약제 모두에서 농도가 낮아질수록 살충효과의 발현이 지연되었으며, 3령 보다 5령 유충에서 반수치사농도가 높게 나타나는 공통적인 경향이 확인되었다. 이는 조명나방을 포함한 여러 나비목 해충에서 유충의 발육이 진행될수록 살충제에 대한 감수성이 감소한다는 기존 보고와 일치한다(Bouvier et al., 2002; Jeong et al., 2023). 발육단계에 따른 살충제의 감수성 차이는 유충의 성장에 따른 체중과 체표면적 증가뿐 아니라 esterases, cytochrome P450 monooxygenases 및 glutathione S-transferases 등과 같은 해독효소의 발현이나 활성이 발육단계에 따라 변화하여 살충제 감수성 감소에 관여할 가능성이 있다(Bouvier et al., 2002; Strode et al., 2006). 다만 본 연구에서는 해독효소 활성을 직접 분석하지 않았으므로 이러한 생리적 기작과의 관련성은 추가적인 연구가 필요하다.
약제의 상대적인 살충활성은 약제 처리방법에 따라 달랐다. 스피네토람은 접촉 처리보다 섭식 처리에서 상대적으로 높은 활성을 보인 반면, 비펜트린과 플룩사메타마이드는 접촉 처리에서 상대적으로 높은 활성을 나타냈다. 이러한 차이는 유효성분별 체표 침투성, 섭식 후 흡수 및 체내 이동 특성, 그리고 표적 부위에 도달하는 과정이 서로 다르기 때문일 가능성이 있다(Jeong et al., 2023; Park et al., 2025). 또한 접촉독성의 효과는 생물검정 방법의 영향을 받을 수 있다. Jeong et al.(2023)은 약제가 처리된 표면에 유충을 일정 시간 노출시키는 방법을 사용한 반면, 본 연구에서는 희석된 약제를 유충의 체표에 직접 분무하였다. 따라서 서로 다른 연구에서 얻어진 섭식독성과 접촉독성의 상대적 크기를 비교할 때에는 약제 자체의 특성뿐 아니라 노출방법과 시험조건도 함께 고려해야 한다.
스피네토람은 어린 유충에서 섭식처리에 의한 활성이 높았다. 스피노신계 살충제는 곤충의 신경계를 과도하게 흥분시켜 운동 이상과 마비를 일으키며, 약제에 노출된 곤충에서 섭식활동이 빠르게 억제되는 특징을 갖는다(Salgado, 1998). 이러한 특성은 식물 조직 내부로 침입하기 전 잎을 섭식하는 조명나방 어린 유충의 방제에 유리하게 작용할 수 있다. 실제로 Lee et al.(2022)은 연천과 포천의 율무 포장에서 스피네토람 처리 시 조명나방 대상으로 각각 93.2%와 96.9%의 방제효과를 보고하였다. 이는 본 연구에서 확인한 스피네토람의 살충활성이 야외조건에서 보고된 방제효과와 일치하며, 조명나방 발생초기에 활용할 수 있는 유효한 방제수단임을 뒷받침한다.
비펜트린은 접촉독성이 특히 높게 나타났으며, 고농도 처리에서는 살충효과가 빠르게 나타나는 특성을 보였다. 이는 피레스로이드계 살충제가 전압 개폐성 나트륨 통로의 정상적인 기능을 교란하여 빠른 신경흥분과 마비를 유발하는 작용 특성과 관련될 수 있다(Soderlund, 2012). 반면 약제 농도가 낮을수록 살충효과가 감소하여 실제 포장에서는 등록기준에 따른 적정 처리농도를 유지하면서 식물체에 약제가 균일하게 부착되도록 하는 것이 중요할 것으로 판단된다. 또한 기존 연구에서 동일한 피레스로이드계에 속하는 유효성분 사이에서도 해충에 대한 살충활성에 차이가 보고된 바 있어, 동일한 작용기작 그룹의 약제라도 유효성분과 노출조건에 따라 살충효과가 달라질 수 있다(Jeong et al., 2023; Piccolomini et al., 2018).
플룩사메타마이드는 다른 두 약제와 비교하여 섭식독성에서 후기 유충의 감수성 감소가 상대적으로 크게 나타났으며, 접촉독성에서는 상대적으로 높은 활성을 나타냈다. 또한 낮은 농도에서는 처리 직후보다 시간이 경과하면서 살충률이 지속적으로 증가하는 양상이 나타났다. 따라서 플룩사메타마이드의 효과를 평가할 때 단기간의 초기 사망률뿐 아니라 처리 후 일정 기간의 누적 살충효과를 함께 고려할 필요가 있다. 특히 유충의 발육단계에 따른 감수성 변화가 비교적 크게 나타났다는 점을 고려하면, 이 약제도 어린 유충 영기에 처리하는 것이 효과적일 것으로 판단된다.
조명나방 방제에서 발육단계에 따른 감수성 차이는 약제 자체의 독성 차이 이상으로 중요하다. 조명나방 유충은 어린 시기에 잎과 엽초를 가해하다가 3령 전후부터 줄기나 이삭 내부로 침입하기 때문에 유충이 식물체 내부로 이동한 이후에는 살충제가 충체에 직접 도달하기 어려워진다(Jung et al., 2021; Jeong et al., 2023). 따라서 본 연구에서 5령 유충에 대해서도 일정 수준 이상의 살충효과가 확인되었다 하더라도, 실제 포장에서는 후기 유충이 식물체 내부에 위치함으로써 실험실에서와 동일한 약효를 기대하기 어렵다. Jung et al.(2021)은 찰옥수수 포장에서 1세대 어린 유충 발생기에 약제를 처리할 경우 조명나방 피해를 71~82% 억제할 수 있다고 보고하였으며, Lee et al.(2022) 역시 조명나방의 포장 방제를 위해 발생시기 예찰과 적기 약제처리의 중요성을 보고하였다. 따라서 조명나방의 화학적 방제는 높은 영기의 유충을 대상으로 약제 농도를 증가시키는 것보다 어린 유충이 식물체 내부로 침입하기 전에 방제하는 전략이 효율적일 것으로 판단된다.
본 연구에서 사용한 세 약제는 서로 다른 작용기작을 갖고 있으며, 약제에 따라 섭식독성과 접촉독성 의 발현속도가 모두 상이하였다. 이러한 차이는 조명나방 방제용 약제를 선택하고 교호사용 체계를 구성하는 데 유용한 자료가 될 수 있다. 동일한 작용기작의 살충제를 연속적으로 사용하는 것은 특정 작용점에 대한 선택압을 증가시킬 수 있으므로, 방제효율을 유지하기 위해서는 작용기작이 다른 약제를 교호하여 사용하는 것이 필요하다(Cloyd, 2011; Jeong et al., 2023). 다만 본 연구는 3종 살충제와 단일 조명나방 계통을 대상으로 수행하였기에 향후 다양한 약제와 지역계통을 대상으로 한 추가적인 감수성 및 교차저항성 평가가 필요하다. 또한 본 연구에서 높은 활성을 나타낸 스피네토람, 비펜트린 및 플룩사메타마이드와 같이 서로 다른 작용기작의 약제를 유충 발생시기와 약제별 특성에 맞추어 활용한다면 조명나방의 방제효율 향상과 살충제 저항성 관리에 기여할 수 있을 것으로 판단된다.
Acknowledgments
이 연구는 농림축산검역검사기술개발사업(과제번호: PQ20253B006) 연구개발비를 지원받아 수행되었다.
이해상충관계
이 원고의 저자는 이해상충관계가 없음을 선언합니다.
REFERENCES
-
Asahi M, Kobayashi M, Kagami T, Nakahira K, Furukawa Y, et al., 2018. Fluxametamide: A novel isoxazoline insecticide that acts via distinctive antagonism of insect ligand-gated chloride channels. Pestic. Biochem. Physiol. 151:67-72.
[https://doi.org/10.1016/j.pestbp.2018.02.002]

- Bae YS, 2001. Family Pyraloidea: Pyraustinae & Pyralinae. Economic Insects of Korea 9, Koreana Supplement 16. National Institute of Agricultural Science and Technology and Center for Insect Systematics, Seoul, Korea.
-
Blandino M, Scarpino V, Vanara F, Sulyok M, Krska R, et al., 2015. Role of the European corn borer (Ostrinia nubilalis) on contamination of maize with 13 Fusarium mycotoxins. Food Addit. Contam. A 32(4):533-543.
[https://doi.org/10.1080/19440049.2014.966158]
-
Bouvier JC, Boivin T, Beslay D, Sauphanor B, 2002. Age-dependent response to insecticides and enzymatic variation in susceptible and resistant codling moth larvae. Arch. Insect Biochem. Physiol. 51(2):55-66.
[https://doi.org/10.1002/arch.10052]
- Cloyd RA, 2011. Pesticide mixtures. pp. 69-80. In: Stoytcheva M (Ed). Pesticides – Formulations, Effects, Fate. IntechOpen, London, UK.
- Grahame J, 2022. Ostrinia furnacalis (Asian Corn Borer). CABI Compendium. CABI, Wallingford, UK.
-
Guo J, He K, Meng Y, Hellmich RL, Chen S, et al., 2022. Asian corn borer damage is affected by rind penetration strength of corn stalks in a spatiotemporally dependent manner. Plant Direct 6(2):e381.
[https://doi.org/10.1002/pld3.381]
- IRAC, 2026. IRAC mode of action classification scheme, version 11.5. Insecticide Resistance Action Committee.
-
Jeong IH, Kim L, Kim EY, Lee SW, Jung JK, 2023. Oral, contact, and residual toxicity of six insecticides to Asian corn borer, Ostrinia furnacalis larvae. Korean J. Pestic. Sci. 27(2):85-92. (In Korean)
[https://doi.org/10.7585/kjps.2023.27.2.85]
- Jung JK, Seo BY, Jeong IH, Kim EY, Lee SW, 2021. Application timings of insecticides to control the first generation of the Asian corn borer, Ostrinia furnacalis in waxy maize field. Korean J. Appl. Entomol. 60(4):431-448. (In Korean)
- Jung JK, Park JH, Im DJ, Han TM, 2005. Parasitism of Trichogramma evanescens and T. ostriniae (Hymenoptera: Trichogrammatidae) to eggs of the Asian corn borer, Ostrinia furnacalis (Lepidoptera: Pyralidae). Korean J. Appl. Entomol. 44(1):43-50. (In Korean)
- Kim EY, Kim IH, Seo BY, Kim Y, Park CG, et al., 2020. Diapause and voltinism in Ostrinia furnacalis in Suwon, and larval instar sensitivity to diapause induction. Korean J. Appl. Entomol. 59(3):185-202. (In Korean)
-
Kirst HA, 2010. The spinosyn family of insecticides: Realizing the potential of natural products research. J. Antibiot. 63(3):101-111.
[https://doi.org/10.1038/ja.2010.5]
- Lee YB, Hwang CY, Choi KM, Shim JY, 1980. Studies on the bionomics of the oriental corn borer Ostrinia furnacalis (Guenee). Korean J. Plant Prot. 19(4):187-192. (In Korean)
- Lee YS, Jung JK, Jang JH, Kim SH, Choi JY, et al., 2022. Control efficacy of several pesticides against Asian corn borer, Ostrinia furnacalis, in Job’s tears fields. Korean J. Appl. Entomol. 61(1):275-281. (In Korean)
-
Lu W, Liu Z, Fan X, Zhang X, Qiao X, et al., 2022. Nicotinic acetylcholine receptor modulator insecticides act on diverse receptor subtypes with distinct subunit compositions. PLoS Genet. 18(1):e1009920.
[https://doi.org/10.1371/journal.pgen.1009920]
-
Mutuura A, Munroe E, 1970. Taxonomy and distribution of the European corn borer and allied species: genus Ostrinia (Lepidoptera: Pyralidae). Mem. Entomol. Soc. Can. 102(S71):1-112.
[https://doi.org/10.4039/entm10271fv]
-
Nafus DM, Schreiner IH, 1991. Review of the biology and control of the Asian corn borer, Ostrinia furnacalis. Trop. Pest Manage. 37(1):41-56.
[https://doi.org/10.1080/09670879109371535]
-
Nafus DM, Schreiner IH, 1987. Location of Ostrinia furnacalis (Lepidoptera: Pyralidae) eggs and larvae on sweet corn in relation to plant growth stage. J. Econ. Entomol. 80(2):411-416.
[https://doi.org/10.1093/jee/80.2.411]
-
Park HM, Mo HH, Park YJ, 2025. Oral and contact toxicity of fluxametamide to fall armyworm, Spodoptera frugiperda larvae. Korean J. Pestic. Sci. 29(1):55-63. (In Korean)
[https://doi.org/10.7585/kjps.2025.29.1.55]
-
Piccolomini AM, Whiten SR, Flenniken ML, O’Neill KM, Peterson RKD, 2018. Acute toxicity of permethrin, deltamethrin, and etofenprox to the alfalfa leafcutting bee. J. Econ. Entomol. 111(3):1001-1005.
[https://doi.org/10.1093/jee/toy014]
-
Quan Y, Mason CE, He KL, Wang ZY, Wei HY, 2023. Impact of heat waves on egg survival and biological performance across life stages in the Asian corn borer. Entomol. Exp. Appl. 171(2):129-137.
[https://doi.org/10.1111/eea.13262]
-
Salgado VL, 1998. Studies on the mode of action of spinosad: insect symptoms and physiological correlates. Pestic. Biochem. Physiol. 60(2):91-102.
[https://doi.org/10.1006/pest.1998.2332]
- SAS Institute Inc., 1989. SAS/STAT User’s guide. Cary, NC.
-
Soderlund DM, 2012. Molecular mechanisms of pyrethroid insecticide neurotoxicity: recent advances. Arch. Toxicol. 86(2):165-181.
[https://doi.org/10.1007/s00204-011-0726-x]
-
Soderlund DM, Knipple DC, 2003. The molecular biology of knockdown resistance to pyrethroid insecticides. Insect Biochem. Mol. Biol. 33(6):563-577.
[https://doi.org/10.1016/S0965-1748(03)00023-7]
-
Sparks TC, Crossthwaite AJ, Nauen R, Banba S, Cordova D, et al., 2020. Insecticides, biologics and nematicides: Updates to IRAC’s mode of action classification. Pestic. Biochem. Physiol. 167:104587.
[https://doi.org/10.1016/j.pestbp.2020.104587]
-
Strode C, Steen K, Ortelli F, Ranson H, 2006. Differential expression of the detoxification genes in the different life stages of the malaria vector Anopheles gambiae. Insect Mol. Biol. 15(4):523-530.
[https://doi.org/10.1111/j.1365-2583.2006.00667.x]
-
Ye Y, Wang S, Zhang S, Li C, Zhou S, et al., 2026. Ten-year dynamics of seven major maize pests and recent insecticide resistance status of Ostrinia furnacalis in Henan Province, China. Ind. Crops Prod. 246: 123407.
[https://doi.org/10.1016/j.indcrop.2026.123407]
-
Yin C, Chen Z, Chen W, Wang Z, 2025. Baseline susceptibility of Plutella xylostella and Spodoptera exigua to fluxametamide in China. Insects 16(3):267.
[https://doi.org/10.3390/insects16030267]
Jun-Hyeong Kang, Major in Plant Medicals, School of Life Sciences and Biotechnology, Gyeongkuk National University, Undergraduate Student, https://orcid.org/0009-0005-4807-1187, Insect rearing, Methodology & Data analysis.
Min-Goo Park, Department of Bioenvironmental Chemistry, Jeonbuk National University, Professor, https://orcid.org/0000-0003-2479-3693, Writing - editing & review.
Youngjin Park, Major in Plant Medicals, School of Life Sciences and Biotechnology, Gyeongkuk National University, Professor, https://orcid.org/0000-0002-4526-0805, Research Design, Investigation & Writing manuscript.